WMR-4 肽的理性设计与纳米纤维递送:一种针对尖孢镰刀菌的双重抗真菌策略
纳米平台的设计、合成与表征
基于使用玻璃纸系统获得的结果,即肽 WMR-4 无法抑制真菌穿透,开发有效的递送策略以克服限制肽到达入侵病原体的食物相关屏障至关重要。在此背景下,我们开发了一个基于自组装肽的递送平台,用于运输 WMR-4 并发挥其对尖孢镰刀菌的抗真菌活性。自组装肽具有很强的能力,可以排列成稳定且结构明确的纳米结构,例如纳米纤维。在我们的设计中,纳米平台由两种结构肽 P1 和 P2 组成,它们具有一个六丙氨酸序列和一个连接到 C 端赖氨酸 ε-氨基上的 C19 脂质尾。这种配置形成了包裹在纤维核心内的疏水域。肽 P1 和 P2 还具有一个亲水域,其特征分别是带正电(Arg-Lys)和带负电(Asp)的两个残基。引入这些残基是为了促进分子间氢键,并通过它们的互补电荷实现额外的缔合相互作用。
此外,肽 P2 还与设计位于纳米纤维表面的生物部分相连。在我们的设计中,表面用能够跨膜的细胞穿透肽(命名为 gH625)和能够抑制真菌生长的 AMP WMR-4 进行了功能化(图 4)。
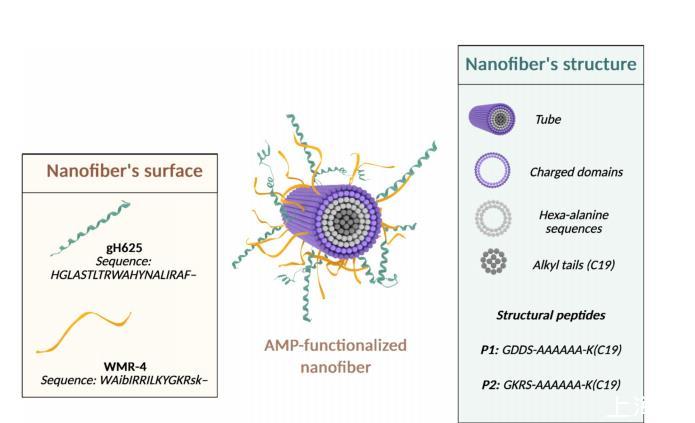
图 4:纳米纤维设计示意图。显示了由结构肽 P1 和 P2 组成的纳米纤维,其表面功能化了细胞穿透肽 gH625(通过 P3)和抗菌肽 WMR-4(通过 P2-a)。
为了制备 WMR-4 功能化的纳米纤维,我们的起点是由 P1:P2:P3(摩尔比 50:40:10)制成的纳米纤维,称为 NF-gH,我们之前已在癌症应用中对其进行了表征。P1、P2 和 P3 在此特定摩尔比下的共组装确定了临界聚集浓度(CAC)值为 15.2 ± 0.9 μM,表明具有良好的聚集趋势并形成直径约 12 ± 2 nm、长度约 150 ± 50 nm 的纳米纤维,如透射电子显微镜(TEM)图像所示。为了在纳米纤维表面进行 WMR-4 功能化,将肽 WMR-4 共价连接到肽 P2 上,得到 P2-a,其单独具有很强的聚集能力,CAC 为 12.2 ± 0.1 μM(表 2)。当我们以 50:10:40(P1:P3:P2-a)的比例共组装肽 P2-a 与 P1 和 P3 以形成纳米纤维 NF(其中 P2 完全被 P2-a 取代)时,我们计算出的 CAC 为 7.2 ± 0.1 μM(图 5A)。选择此比例是为了在纳米纤维表面保持与先前对镰刀菌表现出良好活性相同的 WMR-4 浓度。
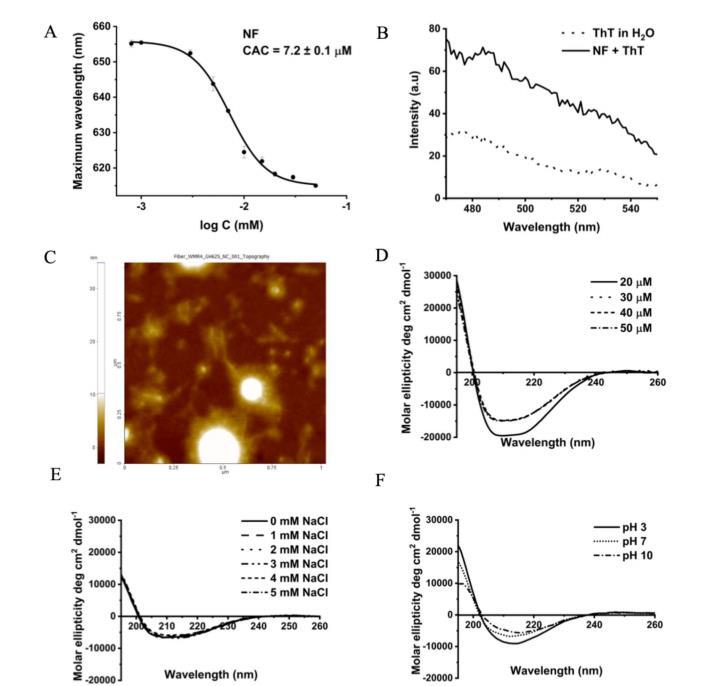
图 5:纳米纤维 NF 的表征。面板 A:使用尼罗红测定法测定 NF 的临界聚集浓度(CAC)。面板 B:硫黄素 T(ThT)测定法证实了纳米纤维的形成。面板 C:原子力显微镜(AFM)图像显示了沉积在云母上的纳米纤维的形貌。面板 D-F:通过圆二色(CD)光谱法评估 NF 在不同稀释度(D)、pH 值(E)和离子强度(F)下的结构稳定性。
肽的组装和纳米纤维的形成也通过硫黄素 T(ThT)试验得到支持和研究,如图 5B 所示。ThT 常用于监测自组装纳米结构的形成,因为它与这些结构内部的相互作用阻碍了苯环和苯并噻唑环之间的旋转,导致荧光增强。在 NF 水化后,加入 ThT,记录了大约 480 nm 处 ThT 发射的增强。图 5B 显示 ThT 荧光的增加,支持了肽组装和纳米纤维的形成。此外,通过 AFM 在云母表面观察到了纳米纤维的形成。图 5C 显示了长度在 200 至 300 nm 之间、直径约 25 nm 的纳米纤维的存在。
此外,通过动态光散射(DLS,表 2)和圆二色(CD)光谱法对纳米纤维 NF 的表面电荷和结构稳定性进行了表征。如表 2 所示,Zeta 电位分析显示 NF-gH 和 NF 均具有带正电的表面,NF 显示出更高的值,为 +33.2 ± 0.9 mV,这可能是由于 WMR-4 在表面的浓度升高,这对于与带负电的微生物膜相互作用很重要。此外,通过圆二色(CD)光谱法研究了 NF 二级结构的稳定性。纳米纤维 NF 显示出完全聚集的 α-螺旋构象,并且在稀释效应、离子强度和 pH 环境下均保持了其稳定性(图 5D-F)。
纳米纤维递送系统克服了 WMR-4 的局限性
为了克服 WMR-4 的局限性,我们在多个底物模型上评估了超分子纳米纤维递送平台的抗真菌性能。功能化有 WMR-4 的 NF 显示出独特的活性。生长抑制试验表明,在所有测试浓度(2.5-40 μM)下,NF 制剂对总体真菌生物量积累的影响很小,处理组和对照组之间未观察到统计学上的显著差异(图 6A)。然而,芽管形成试验揭示了一个更具选择性的效应,测试的最高浓度(40 μM)显著降低了芽管形成,而较低浓度(20、10、5 和 2.5 μM)对萌发没有显著的抑制作用(图 6B)。这表明纳米纤维递送系统可能需要更高的局部浓度才能达到与游离 WMR-4 相当的功效,这可能是由于控释动力学或生物利用度的改变所致。
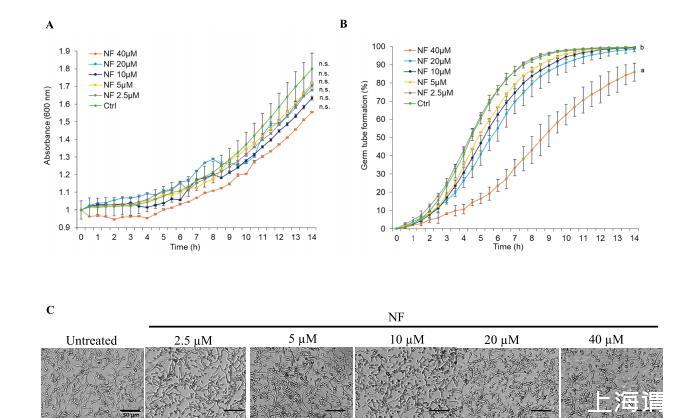
图 6:NF 仅在高浓度下抑制尖孢镰刀菌的芽管形成。面板 A:生长动力学显示在测试的 NF 浓度(2.5-40 μM)下对真菌生物量积累影响甚微。面板 B:芽管形成分析显示仅在最高浓度(40 μM)下有显著抑制。面板 C:显微图像证实了对萌发形态的浓度依赖性效应。比例尺 = 50 μm。数据代表来自生物学重复的平均值 ± SD,通过单因素方差分析进行统计。
然而,当我们在玻璃纸膜穿透试验中测试 NF(相当于 80 μM WMR-4 和 20 μM gH625)时,我们注意到与未处理对照相比,纳米纤维存在下尖孢镰刀菌的生长显著减少(图 7A)。尽管如此,真菌菌丝仍保持了穿透膜屏障的能力,但成功穿过并在下方琼脂表面建立生长的真菌生物总量显著减少(图 7B),这很可能是 NF 处理所观察到的增殖能力降低的直接结果。这些结果表明,NF 处理有效地削弱了真菌在固体表面的增殖能力,而穿透机制基本未受影响。
游离 WMR-4 与 NF 制剂的对比性能特征反映了肽在不同测定系统中分布动力学的可预测差异。虽然游离 WMR-4 通过直接的真菌细胞接触和最佳生物利用度在液体培养活性中表现出优势,但其应用于固体表面会导致从施加点径向扩散,产生浓度梯度,从而随着时间的推移降低局部抗真菌效果。相反,纳米纤维递送系统保持了表面附着性和施药点的持续肽浓度,以牺牲液体培养中的迁移能力为代价,换取了增强的屏障保护能力。这种机制上的差异验证了我们的递送系统设计,其中明显的 NF 液体培养局限性代表了在农业相关的基于屏障的应用中获得显著改善性能的可接受的折衷方案。
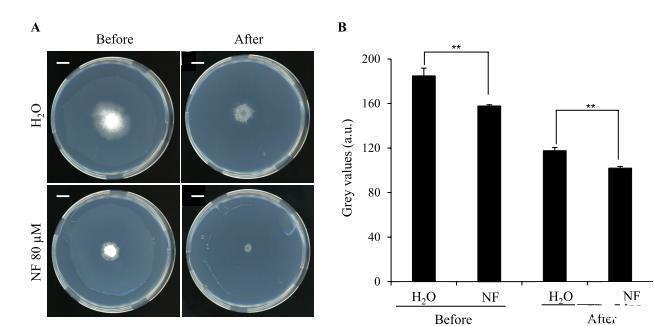
图 7:NF 部分抑制尖孢镰刀菌穿透玻璃纸膜。面板 A:代表性图像显示,与对照相比,NF 处理减少了真菌在膜表面的生长(“之前”面板),并且在膜移除后(“之后”面板),穿透到下方琼脂的真菌生物量也减少了。面板 B:通过灰度值定量分析穿透真菌生物量,显示 NF 处理显著降低了穿透量。
为了确定与递送系统结合的 WMR-4 是否在更具生物学相关性的环境中表现出增强的抗真菌功效,我们随后使用天然植物组织底物评估了纳米纤维的性能。然而,对天然植物组织的评估揭示了截然不同的结果,区分了腐生定殖和屏障穿透机制。苹果果实切片试验用于评估营养丰富条件下的腐生生长能力,该试验暴露了缺乏保护性表皮屏障的内部组织。孵育 4 天后,对照果实显示出广泛的组织浸软,而 NF 处理的表面显示出严重受损的腐生定殖,保持了组织完整性且真菌扩展极小(图 8A)。这表明 NF 在缺乏天然保护屏障的情况下,对机会性组织定殖具有显著的抗真菌功效。
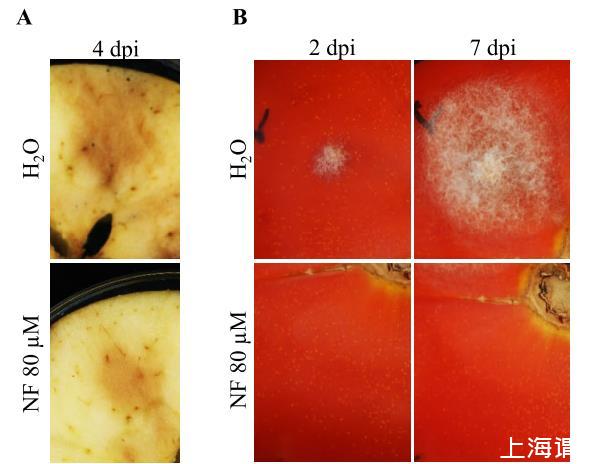
图 8:NF 在植物组织上表现出屏障特异性保护。面板 A:苹果果实切片试验显示,与对照相比,NF 处理抑制了腐生生长,保持了组织完整性。面板 B:番茄果实试验显示,NF 处理阻止了真菌穿透完整的表皮屏障,而未处理的对照果实出现了广泛的菌丝生长和组织退化。
相比之下,番茄果实试验旨在评估尖孢镰刀菌穿透完整生物屏障的能力,特别是构成抵抗真菌入侵主要防御的富含角质的表皮细胞层。这些实验模拟了自然感染过程,病原体必须克服复杂的植物防御结构才能获得营养源。虽然对照果实在接种后 7 天发展出广泛的菌丝垫和组织退化,表明成功突破了表皮屏障,但 NF 处理的表面即使在延长孵育期后也未显示出定殖迹象,并保持了组织结构(图 8B)。在番茄试验中观察到的增强保护表明,与单纯的腐生生长抑制相比,NF 针对生物屏障穿透机制提供了优越的功效。
相关新闻推荐
2、瘤胃微生物发酵特性与降解效率两大影响因素——引言、摘要、材料与方法
3、利用细菌生长曲线表征芳樟醇对三文鱼莓实假单胞菌MS 02的抑菌效果(二)