7-O-甲基-异微凸剑叶莎醇给抗脓肿分枝杆菌筛选
脓肿分枝杆菌(Mycobacterium abscessus)是我近年越看越头疼的菌。
它是快速生长型非结核分枝杆菌,细胞壁高疏水、低通透,天然带着多重耐药底子。临床主要靠大环内酯类、阿米卡星、替加环素、亚胺培南多药联合,但诱导耐药、获得性耐药、外排泵和修饰酶一起上,治愈率长期徘徊在低位,复发率居高不下。
所以看到这篇关于7-O-甲基-异微凸剑叶莎醇的材料,我第一反应不是“又是个天然产物抑菌故事”,而是它的数据曲线本身就在挑衅传统筛选逻辑。
一、先看最反直觉的一组结果
化合物是7-O-甲基-异微凸剑叶莎醇,天然异黄烷类,黄酮家族分支,可从刺槐、虎杖里拿到。
按常规抗分枝杆菌筛选流程,先跑体外MIC:
• 菌:脓肿分枝杆菌标准株ATCC19977
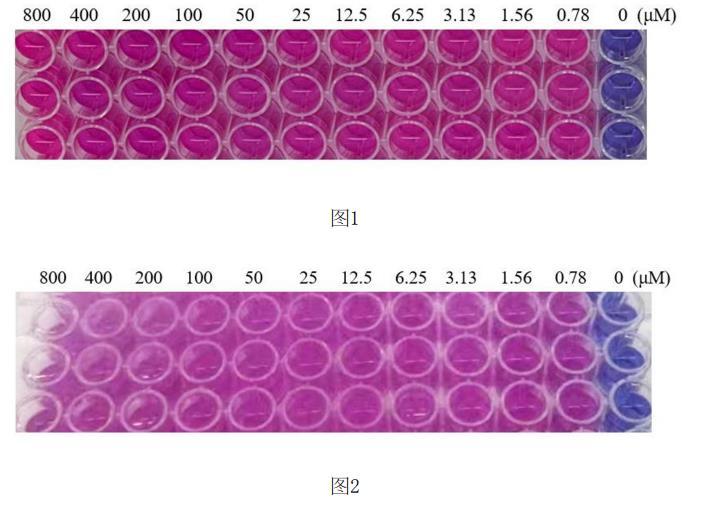
• 方法:MH肉汤微量稀释 + AlamarBlue显色
• 浓度顶到:800 μM
• 结果:颜色仍粉,生长不被抑制,MIC > 800 μM
同一条件下,对照黄酮槲皮素也是MIC > 800 μM。
也就是说,按“直接杀菌剂”的筛选项,这两个分子都该被扔掉。
但研究者没扔。他们换了个更贴近感染真实的模型:THP-1巨噬细胞胞内感染。
二、胞内模型才是真正的分水岭
脓肿分枝杆菌是兼性胞内菌。巨噬细胞不是被动容器,而是它躲抗生素、完成持久感染的“避风港”。
实验设计很干净:
1. THP-1用20 ng/mL PMA诱导48小时,分化成贴壁巨噬细胞;
2. MOI=5感染标准株6小时;
3. PBS洗掉胞外菌;
4. 加10 μM / 20 μM药物,24小时;
5. 0.05% Triton X-100裂解,10倍梯度稀释,7H10涂板,3天后数CFU。
结果直接翻转:
• 对照组胞内菌载:155×10⁵个
• 10 μM:降到93.33×10⁵个,杀菌率39.79%(P<0.0001)
• 20 μM:降到98×10⁵个,杀菌率36.77%(P=0.0004)
注意,这里不是“杀菌率随浓度翻倍而翻倍”。10 μM已经吃掉大部分效应,20 μM没再显著增强。这提示两件事:
• 作用可能不是线性 occupancy 模型;
• 更像是“把巨噬细胞某条清除通路调到够用”,而不是化合物直接钻进菌体内毒杀。
三、槲皮素这个对照,比主结果还值钱
很多天然产物文章喜欢拿“同属黄酮”做阳性或阴性对照,但常常草草带过。这份材料里,槲皮素是被认真用起来的。
同浓度10/20 μM处理胞内感染模型:
• 槲皮素:胞内菌载不变;
• 7-O-甲基-异微凸剑叶莎醇:显著下降。
这说明什么?
不是“黄酮类都抗炎抗病毒所以顺手压一下分枝杆菌”。而是结构特异性极强——甲氧基位置、异黄烷骨架、取代基空间,可能决定了它能不能碰得到宿主细胞内那条抗菌链路。
这一点对后续构效关系(SAR)非常关键:别在黄酮母核上乱改,先守住7-O-甲基和异微凸剑叶莎醇的立体化学。
四、临床分离株验证,把“细胞系漂亮数据”拉回现实
标准株数据再好看,也怕临床株打脸。
研究者拿了3株真实肺病患者痰源分离株(编号36807、36504、38391,记脓肿1/2/3),20 μM单浓度跑同样流程:
• 脓肿1:205×10⁵ → 98.33×10⁵,杀菌率52.03%
• 脓肿2:171.67×10⁵ → 93.33×10⁵,杀菌率45.63%
• 脓肿3:156.67×10⁵ → 63.33×10⁵,杀菌率59.58%
三株都显著有效,P均<0.0001。
而且临床株的杀菌率甚至略高于标准株。这说明该分子不是只打“实验室驯化菌”,对异质性的临床背景菌也站得住。
对NTM药物发现来说,这一脚踩得很实。
五、安全性窗口:先确认不是“毒死细胞顺带清菌”
胞内抑菌最怕一种误导:化合物把巨噬细胞毒死了,菌自然也少。
CCK8数据补上了这道防火墙:
• 7-O-甲基-异微凸剑叶莎醇:1.25–40 μM处理72小时,对THP-1无显著毒性;
• 槲皮素:20 μM内也无显著毒性,但无抑菌效果。
所以“有效浓度”和“毒性浓度”之间有明显缓冲区。10–20 μM是可用窗口,不是悬崖边上的活性。
六、机制上我更愿意把它叫“宿主导向型分子”
目前材料没做转录组、自噬流、ROS、溶酶体融合、细胞因子面板,所以不能断言机制。
但从表型可以谨慎推三层:
1. 不是直接抗菌
800 μM体外不抑生长,排除壁合成抑制、蛋白合成抑制那类“经典抗生素打法”。
2. 依赖宿主细胞环境生效
同样浓度,在培养基里没用,在巨噬细胞内有用。
3. 可能增强宿主清除,而非直接杀菌
10 μM接近平台,符合“调免疫阈值”而不是“浓度依赖毒杀”。
候选方向(待验证,不杜撰):
• 促进吞噬体-溶酶体融合;
• 增强自噬介导的胞内菌降解;
• 调节TNF-α/IL-1β/IL-10平衡;
• 影响macrophage polarization状态。
这和近年“host-directed therapy”思路完全对得上:不追着菌突变跑,而是把宿主战场修好。
七、技术上值得改进的一点:把体外生长监测从“终点读色”升级
原文体外部分用AlamarBlue终点判读,3天培养后再加显色剂24小时。
这套方法稳,但信息密度低:只知道“最后长没长”,不知道“怎么长的”。
如果我在同样实验里嵌入丹麦Biosense的oCelloScope微生物生长动态监测系统,价值会立刻出来:
• 放培养箱里,对96孔板非侵入连续成像;
• 不染色、不取样,实时抓脓肿分枝杆菌的延滞期、生长速率、聚团形态;
• 比OD600灵敏约250倍,低至5×10³ CFU/mL可检;
• 同时输出生长曲线和形态学参数(面积、圆度、丝状化、聚集指数)。
对7-O-甲基-异微凸剑叶莎醇这种“体外不直接杀”的分子,oCelloScope能帮我们回答几个关键问题:
• 它是完全无作用,还是延缓了早期适应?
• 高浓度下是否改变细菌聚集态、降低代谢活跃度?
• 在含巨噬细胞条件培养基的共培养体系里,菌的“准生长态”有没有被压制?
尤其对NTM这种生长慢、易成团、壁屏障强的菌,传统浊度法容易漏掉“长得慢一点”的弱效应。oCelloScope能把这种弱效应变成可量化动力学。
当然,胞内CFU还是得靠裂解涂板——成像替代不了活菌计数。两者是互补,不是替代。
八、方法学上最该被记住的一句话
这篇材料最大的贡献,不是发现某个“神药”。
而是把一个被常规MIC筛选会错杀的分子和盘托出:
体外MIC阴性,不等于临床前无效。
对胞内菌,必须进宿主细胞模型。
传统抗NTM高通量筛选里,800 μM不抑生长基本就淘汰了。但脓肿分枝杆菌的痛点恰恰在于——直接杀菌分子越来越难找,耐药进化太快。宿主导向分子本来就不该用“杀培养菌”的尺子量。
7-O-甲基-异微凸剑叶莎醇提醒我们:黄酮类天然产物里,可能藏着一批“不杀菌、只帮宿主杀菌”的候选物,只是被旧筛选范式埋了。
九、后续最值得补的四刀
1. 机制切片
自噬抑制剂(如3-MA)、溶酶体酸化抑制剂(如氯喹)预处置,看杀菌率是否被逆转。
2. 转录层面
RNA-seq看巨噬细胞治疗后IFN、IL-1β、LC3、TFEB通路;同时看菌内应激基因(whiB、sigH、erm41)是否被动。
3. 体内验证
小鼠气道感染模型,评估肺载菌量、病理评分、炎症因子;别只停在THP-1。
4. 结构迭代
保留异黄烷母核,做7-O-甲基必要性、酚羟基保护、B环氟代/甲氧基扫描。目标不是更“毒”,是更低效浓度下更稳的宿主调节。
十、我的判断
7-O-甲基-异微凸剑叶莎醇目前不是药,是一个“机制类型稀缺”的先导信号。
它的价值有三层:
• 对脓肿分枝杆菌:标准株+临床株双验证,胞内杀菌率36–60%;
• 对筛选逻辑:打破“MIC优先”的单一审美;
• 对天然产物研究:证明不是所有黄酮都行,结构边界很重要。
在“抗生素噩梦”这个赛道里,我不指望一个分子单挑全部耐药问题。但我很看重这种分子:它逼我们把目光从“菌死了没”移回“宿主会不会打菌”。
如果后续机制能坐实是宿主导向,再叠剂型、叠联用、叠体内药效,它有可能成为一类新思路的起点——不是杀进菌壁,而是把巨噬细胞重新教明白怎么干活。
这才是这类天然异黄烷真正值得继续挖的地方。