myxinidin 衍生物WMR-4 对尖孢镰刀菌的抗真菌功效和膜破坏机制
结果与讨论
WMR-4:一种稳定性优化的 myxinidin 衍生物
肽 WMR-4(NH₂-WAibIRRILKYGKRsk-CONH₂),是 WMR 的一种修饰版本,其中 Gly2 被非天然氨基酸 2-氨基异丁酸(Aib)取代,Ser13 和 Lys14 被其 D-对映异构体取代,旨在增强其蛋白水解稳定性和抗菌应用。这些组合修饰产生了一种蛋白水解稳定性显著增强的肽变体。值得注意的是,在人血清中孵育 5 小时后,大约 70% 的 WMR-4 保持完整,而天然的 WMR 肽在同一时间内完全降解。此外,这些局部修饰也促进了 WMR-4 针对强效物种如白色念珠菌(C. albicans)、嗜麦芽窄食单胞菌(S. maltophilia)和木糖氧化无色杆菌(A. xylosoxidans)的生物膜抑制和根除活性的增强。这些有希望的结果促使我们评估 WMR-4 对尖孢镰刀菌的活性,以期其在农业环境中的潜在应用。
WMR-4 对尖孢镰刀菌的抗真菌功效和膜破坏机制
通过监测真菌生长和芽管形成来评估 WMR-4 对尖孢镰刀菌的活性。WMR-4 对这两个参数均表现出剂量依赖性的抑制作用,表明其作为一种有效的抗真菌剂的潜力。特别是,生长抑制试验显示,与未处理对照相比,在所有测试浓度(10-100 μM)下,WMR-4 均显著减少了真菌生物量的积累(p < 0.0001)(图 1A)。即使在最低测试浓度(10 μM)下,也观察到了实质性的抗真菌活性,证明了该肽强大的抑制能力。在 30 μM 及以上的浓度下,达到了最大的生长抑制效果,在这些较高浓度之间未观察到统计学上的显著差异,表明在整个 14 小时的观察期内,剂量-反应关系呈现平台效应。
重要的是,芽管形成分析表明,WMR-4 以浓度依赖性方式有效阻止了分生孢子萌发(图 1B)。在 100 μM 时,与对照相比,WMR-4 将芽管形成减少了约 62%(p < 0.0001)。在较低浓度下也观察到显著抑制,50 μM 和 30 μM 处理分别显示出 62% 和 60% 的减少。即使在最低测试浓度(10 μM)下,WMR-4 仍能提供显著的抑制(减少 47%,p < 0.05)。使用 Tukey 多重比较检验的统计分析显示,所有 WMR-4 浓度在生长和萌发参数方面均与对照显著不同。值得注意的是,30 μM 及以上的浓度产生的效果彼此之间没有显著差异,表明在较高浓度下达到了最大抑制效果。这些发现共同确立了 WMR-4 作为一种有效的抗真菌候选物,能够在体外抑制尖孢镰刀菌的生长和萌发。
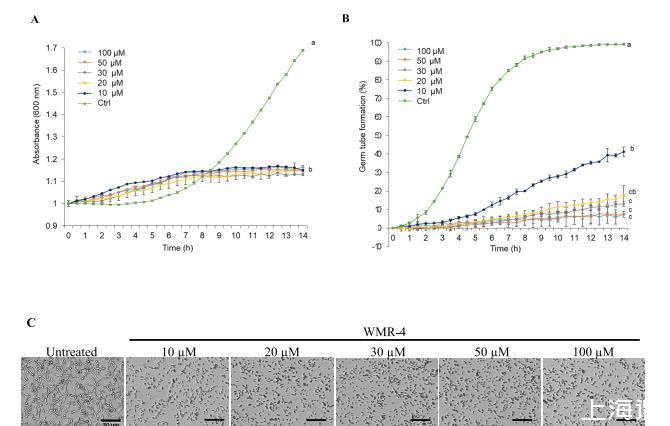
图 1:WMR-4 抑制尖孢镰刀菌的生长和芽管形成。面板 A:生长动力学显示在所有测试浓度(10-100 μM)下真菌生物量积累的剂量依赖性减少。面板 B:芽管形成分析显示在 10-100 μM 浓度范围内萌发的显著抑制。数据代表来自生物学重复的平均值 ± SD,通过单因素方差分析和 Tukey 多重比较检验进行统计分析。
为了阐明 WMR-4 抗真菌活性的潜在机制,我们进行了一系列生物物理研究,以探索其与模拟真菌膜的脂质双层的相互作用。这些人造膜模型使我们能够在受控环境中研究其抗菌活性背后的潜在过程。为此,我们制备了由 POPC/POPE/PS/PI/麦角固醇(摩尔比为 30:18:6:6:40)组成的脂质体,以模拟真菌膜。
通过在 LUV 中进行脂质混合和钙黄绿素释放试验来评估 WMR-4 的膜破坏活性。使用标记有 NBD 和 Rho 的 LUV 与未标记的 LUV 混合进行脂质混合试验,以评估 WMR-4 的融合活性。通过记录在添加浓度从 2.5 到 50 μM 递增的肽后,供体荧光(NBD)的降低和受体荧光(Rho)的增加来计算融合活性。
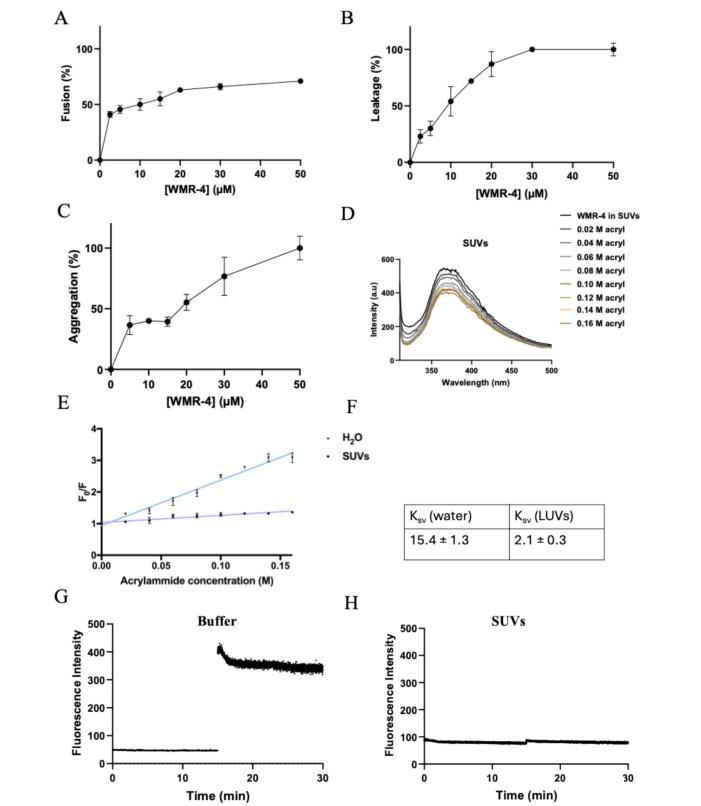
如图 2A 所示,WMR-4 显示出显著的融合活性,在最高浓度 20 μM 时引起约 60% 的膜融合。此外,肽 WMR-4 也诱导了膜通透性的显著增加,即使在最低测试浓度 10 μM 下也观察到约 50% 的钙黄绿素泄漏(图 2B)。这种效应随着肽浓度的增加而加剧,在 30 μM 时达到约 90% 的泄漏。这些结果表明 WMR-4 以浓度依赖性方式与脂质双层相互作用,促进膜失稳和内容物释放。
为了进一步研究这种膜活性背后的机制,我们使用硫黄素 T(ThT)荧光作为探针评估了肽的自关联能力(图 2C)。在模拟真菌膜的 LUV 存在下,观察到 ThT 发射显著增加,表明 WMR-4 在这些条件下经历了实质性的寡聚化。这种聚集可能有助于其膜破坏效应。
为了更仔细地检查 WMR-4 与脂质膜的相互作用和插入,我们使用丙烯酰胺作为猝灭剂进行了 Trp 猝灭实验(图 2D)。位于 WMR-4 N 端的 Trp 残基的内在荧光可作为肽定位的灵敏探针,因为 Trp 在更疏水的环境中发射会增加。在该试验中,丙烯酰胺作为水溶性物质,不能穿透脂质双层,选择性地猝灭暴露于水相环境的 Trp 残基。因此,Trp 插入膜越深,其被丙烯酰胺猝灭的可能性越低,导致荧光猝灭减少。
通过荧光数据的线性回归计算 Stern-Volmer 猝灭常数(Ksv),定量评估每种条件下的 Trp 可及性(图 2E-2F)。正如先前已经证明的,在水中,Trp 完全可被猝灭,WMR-4 的 Ksv 值为 15.4 ± 1.3(图 2F)。相比之下,在 LUV 存在下,WMR-4 的 Ksv 值为 2.1 ± 0.3,清楚地表明 Trp 残基在膜环境中显著更深埋。这些发现支持了与脂质双层的强烈相互作用,并表明该肽在真菌模拟膜中采取了膜插入的构象。
为了进一步确认 WMR-4 插入脂质膜,我们在将肽与由 POPC/POPE/PS/PI/麦角固醇(摩尔比为 30:18:6:6:40)组成的小单层囊泡(SUV)孵育后,使用胰凝乳蛋白酶进行了蛋白水解消化试验(图 2G-2H)。胰凝乳蛋白酶选择性地切割疏水残基处的肽键;然而,如果 Trp 残基埋在膜的疏水核心内,它将变得不易被酶切,从而导致其荧光发射变化最小。
我们监测了在缓冲液中和 SUV 存在下,胰凝乳蛋白酶处理前后 Trp 荧光量子产率的变化。如图 2G-2H 所示,在缓冲液中,Trp 完全暴露于水相环境,酶容易切割肽,导致 Trp 荧光显著增加。相反,当肽与 SUV 结合时,在添加酶后未观察到荧光明显增加。这表明 Trp 受到保护免受酶促攻击,这与膜插入或与脂质双层的深层结合一致。这些结果支持和扩展了我们之前的发现,证实 WMR-4 与磷脂膜紧密结合,并被插入脂质核心或定位在双层界面,从而保护关键残基免受蛋白水解切割。
有趣的是,在先前的研究中,我们证明了 WMR-4 在模拟革兰氏阴性菌膜或白色念珠菌膜的 LUV 中不会聚集,尽管在这两种系统中都有明确的膜插入证据。在这些情况下,Trp 荧光数据显示出对丙烯酰胺猝灭的部分可及性,表明该肽在双层内采取浅层或表面相关的取向。此外,在 5-50 μM 浓度范围内未观察到显著的脂质体泄漏,进一步支持了不存在实质性膜破坏的观点。基于这些观察,我们先前假设 WMR-4 通过地毯式或替代的非裂解机制与革兰氏阴性菌和白色念珠菌膜相互作用。
相比之下,本研究揭示了 WMR-4 对模拟真菌膜(特别是尖孢镰刀菌)的膜的独特行为。在这里,该肽不仅深入插入脂质双层(如 Trp 猝灭和蛋白水解保护试验所示),而且还会发生聚集并诱导显著的膜泄漏。这些特征是裂解作用模式的关键指标,并且与观察到的生物活性一致,从而为进一步了解 WMR-4 抗真菌功效的机制提供了见解。
WMR-4 不能抑制尖孢镰刀菌穿透纤维素基膜
为了弥合体外功效与实际农业应用之间的差距,我们决定评估 WMR-4 抑制真菌穿透纤维素屏障的能力,这些屏障模拟了自然植物入侵过程中遇到的结构性挑战。重要的是,尽管 WMR-4 在液体培养系统中具有有效的抗真菌活性,但玻璃纸膜穿透试验揭示了其在防止屏障入侵方面的保护能力存在关键局限性。实际上,当以 80 μM 浓度(远高于生长和萌发抑制试验中证明的有效抗菌浓度)局部施用时,WMR-4 无法阻止尖孢镰刀菌穿透纤维素膜。
玻璃纸膜穿透的视觉评估显示,在对照(水)和 WMR-4 处理条件下,真菌菌丝均成功穿过膜并在下方琼脂表面建立了生长(图 3)。尽管进行了表面肽处理,真菌仍保留了其侵袭能力,在膜移除后清晰可见穿透证据(WMR-4 之后)。这一发现凸显了在受控培养环境中的抗菌功效与针对自然入侵过程的保护性能之间的根本区别。
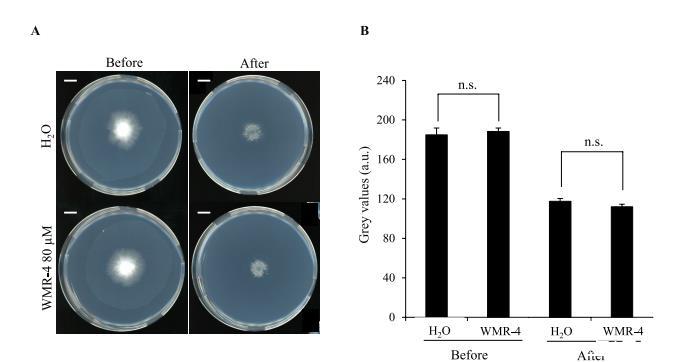
图 3:WMR-4 不能抑制尖孢镰刀菌穿透玻璃纸膜。代表性图像显示,与对照(水)相比,用 WMR-4(80 μM)处理未能阻止真菌穿透纤维素膜,在膜移除后(“之后”面板)仍观察到明显的菌丝生长。
相关新闻推荐
1、HIV感染者口腔白假丝酵母菌的群体生长规律研究方法与结果
2、m6A修饰抑制绣球菌菌丝的生长,实现绣球菌生长周期的 “提速”