mpc1 基因缺失、回补对组蛋白动力学与肌动蛋白动力学的影响
2.3 mpc1 基因缺失对组蛋白动力学的影响
组蛋白定位于染色体上,有丝分裂过程中染色体随着纺锤体的伸长移向两个子细胞,保证了遗传物质的正确传递。利用绿色荧光标记细胞的组蛋白分析 mpc1 基因缺失对粟酒裂殖酵母染色体动力学的影响见图 4。组蛋白形态结果显示(图 4A 从左到右),25 ℃下 mpc1Δ 菌株从染色体开始分离到细胞分开的总时间短于 wt,37 ℃下 mpc1Δ 菌株从染色体开始分离到细胞分开的总时间与 wt 相近。
25 ℃下有丝分裂组蛋白动力学统计分析结果显示(图 4B),wt 和 mpc1Δ 菌株组蛋白开始分裂到细胞形成隔膜(chromosome segregation to cell septa formation, CS-CSF)的时间、细胞形成隔膜到细胞分开(cell septa formation to cell septa separation, CSF-CSS)的时间、组蛋白开始分裂到细胞分开总持续时间分别为(18.40 ± 2.95)、(23.20 ± 3.69)、(41.60 ± 4.75)min 和(14.90 ± 2.38)、(23.30 ± 3.39)、(38.20 ± 3.49)min,与 wt 相比,敲除株细胞形成隔膜到细胞分开的时间无显著差异,但组蛋白开始分裂到细胞形成隔膜的时间、组蛋白开始分裂到细胞分开总持续时间分别缩短了 3.50(P < 0.01)、3.40 min(P < 0.05)。
wt 和 mpc1Δ 菌株组蛋白开始分裂到细胞形成隔膜的时间在总时间中的占比分别为(44.27 ± 5.40)%、(39.15 ± 6.36)%,敲除株时间占比极显著性减小 5.11%(P < 0.01)。以上结果提示,缺失 mpc1 会导致 25 ℃下染色体分离时间缩短。37 ℃下有丝分裂组蛋白动力学统计分析结果显示(图 4C),wt 和 mpc1Δ 菌株组蛋白开始分裂到细胞分开总持续时间分别为(42.20 ± 3.99)和(42.30 ± 3.91)min,无显著性差异。与 25 ℃相比,mpc1Δ 菌株染色体分裂恢复正常。
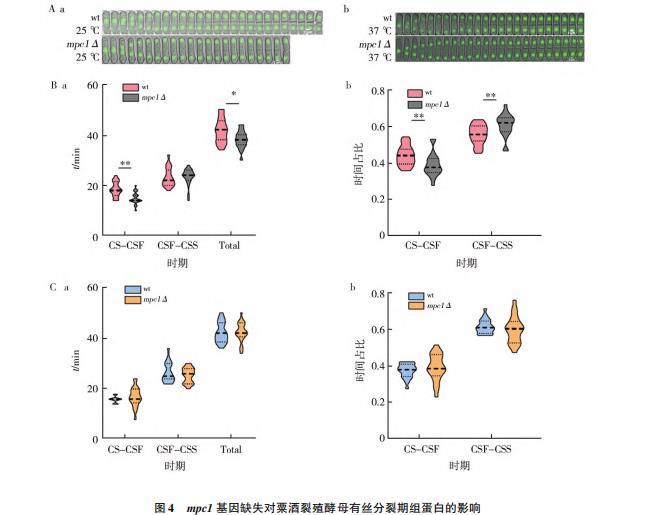
图 4 mpc1 基因缺失对粟酒裂殖酵母有丝分裂期组蛋白的影响
A:25 ℃(a)、37 ℃(b)下,wt 和 mpc1Δ 菌株有丝分裂期组蛋白延时成像,横向代表每隔 2 min 拍摄一次;B、C:分别为 25、37 ℃下,wt 和 mpc1Δ 菌株不同时期的时间(a)和时间占比(b),(n = 20)
2.4 mpc1 基因缺失对肌动蛋白动力学的影响
肌动蛋白不仅参与细胞骨架的形成,还参与细胞分裂,在有丝分裂期肌动蛋白与肌球蛋白聚集形成收缩环,随后收缩将细胞分裂形成两个子细胞。利用绿色荧光蛋白标记 mpc1Δ 菌株的肌动蛋白探究 mpc1 缺失对粟酒裂殖酵母肌动蛋白动力学的影响(图 5)。肌动蛋白形态结果显示(图 5A 从左到右),25 ℃下 mpc1Δ 菌株肌动蛋白开始聚集到完成收缩总时间长于 wt,37 ℃下 mpc1Δ 菌株肌动蛋白开始聚集到完成收缩总时间与 wt 相近。25 ℃下有丝分裂肌动蛋白环聚集和收缩动力学统计分析结果显示(图 5Ba、5C),wt 和 mpc1Δ 菌株肌动蛋白在细胞中央开始聚集到肌动蛋白环完成收缩总时间、肌动蛋白环收缩速率、肌动蛋白环最大直径分别为(28.30 ± 1.49)min、(0.10 ± 0.07)μm/min、(3.69 ± 0.12)μm 和(32.10 ± 4.02)min、(0.09 ± 0.01)μm/min、(3.69 ± 0.17)μm。与 wt 相比,mpc1Δ 菌株肌动蛋白环最大直径无显著差异,但肌动蛋白环开始聚集到完成收缩总时间极显著延长 3.80 min(P < 0.01)、肌动蛋白环收缩速率极显著减慢 0.01 μm/min(P < 0.01)。
以上结果提示,在 25 ℃下,mpc1 基因缺失导致肌动蛋白环开始聚集到完成收缩总时间延长。进一步分析 25 ℃下肌动蛋白环形成、收缩时间及其时间占比(图 5Ba、5C),wt 和 mpc1Δ 菌株肌动蛋白环形成、收缩时间分别为(12.40 ± 1.90)、(15.90 ± 1.52)min 和(15.20 ± 2.78)、(16.90 ± 2.38)min,时间占比分别(43.73 ± 5.59)%、(56.27 ± 5.59)% 和(47.25 ± 5.43)%、(52.75 ± 5.43)%。与 wt 相比,mpc1Δ 菌株肌动蛋白环聚集、收缩时间分别极显著延长 2.80 min(P < 0.01)、1.00 min(P < 0.01),但肌动蛋白环形成、收缩时间占比均无显著差异。
以上结果提示,25 ℃下,缺失 mpc1 基因导致肌动蛋白环形成、收缩时间均延长,因而导致总时间延长。37 ℃下有丝分裂肌动蛋白环聚集和收缩动力学统计分析结果显示(图 5Bb、5D),wt 和 mpc1Δ 菌株肌动蛋白在细胞中央开始聚集到肌动蛋白环完成收缩总时间、肌动蛋白环收缩速率、肌动蛋白环最大直径分别为(26.70 ± 2.77)min、(0.11 ± 0.01)μm/min、(3.90 ± 0.11)μm 和(27.30 ± 2.45)min、(0.10 ± 0.01)μm/min、(3.68 ± 0.27)μm。mpc1Δ 与 WT 菌株肌动蛋白环完成收缩总时间无显著差异。以上结果提示,与 25 ℃相比,37 ℃下 mpc1Δ 菌株肌动蛋白环开始聚集到收缩完成的时间恢复正常。
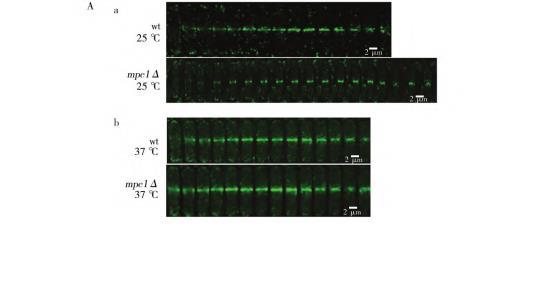
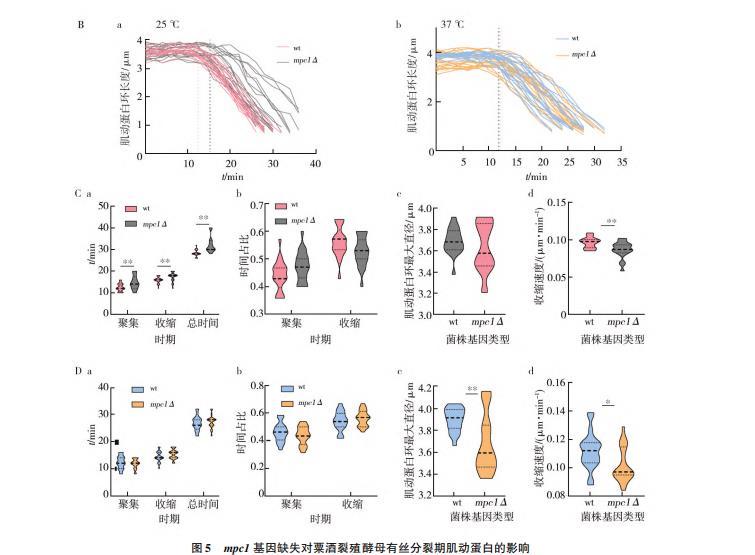
图 5 mpc1 基因缺失对粟酒裂殖酵母有丝分裂期肌动蛋白的影响
A:25 ℃(a)、37 ℃(b)下,wt 和 mpc1Δ 菌株有丝分裂期肌动蛋白延时成像,横向代表每隔 2 min 拍摄一次;B:25 ℃(a)、37 ℃(b)下,wt 和 mpc1Δ 菌株有丝分裂期肌动蛋白环的动态曲线,(n = 20);C、D:25 ℃、37 ℃下,wt 和 mpc1Δ 菌株有丝分裂期肌动蛋白聚集和收缩时间(a)、肌动蛋白聚集和收缩时间占比(b)、肌动蛋白最大直径(c)、肌动蛋白环收缩速度(d),(n = 20)
2.5 mpc1 基因回补对肌动蛋白动力学的影响
针对表型比较显著的肌动蛋白标记 mpc1Δ 菌株,构建了 mpc1 基因回补菌株 C-mpc1Δ,探究 C-mpc1Δ 菌株与 wt 菌株的表型差异。纺锤体形态结果显示(图 6A 从左至右),C-mpc1Δ 菌株纺锤体伸长总时间与 wt 菌株相近。25 ℃下有丝分裂肌动蛋白环聚集和收缩动力学统计分析结果显示(图 6B),wt 和 C-mpc1Δ 菌株肌动蛋白在细胞中央开始聚集到肌动蛋白环完成收缩总时间、肌动蛋白环收缩速率、肌动蛋白环最大直径分别为(27.60 ± 0.89)min、(0.10 ± 0.01)μm/min、(3.69 ± 0.18)μm 和(28.00 ± 1.41)min、(0.10 ± 0.10)μm/min、(3.65 ± 0.06)μm。
与 wt 菌株相比,C-mpc1Δ 菌株肌动蛋白环收缩总时间、收缩速率及肌动蛋白环最大直径均无显著差异。25 ℃下 wt 和 C-mpc1Δ 菌株肌动蛋白环形成、收缩时间分别为(12.40 ± 2.61)、(15.20 ± 2.28)min 和(12.80 ± 1.79)、(15.20 ± 1.10)min,时间占比分别(44.84 ± 0.09)%、(55.16 ± 0.09)% 和(45.60 ± 0.05)%、(54.40 ± 0.05)%。与 wt 菌株相比,C-mpc1Δ 菌株肌动蛋白环聚集、收缩时间以及时间占比均无显著差异。以上结果提示,将 mpc1 基因回补到 mpc1Δ 菌株后,表型与 wt 菌株无显著差异。
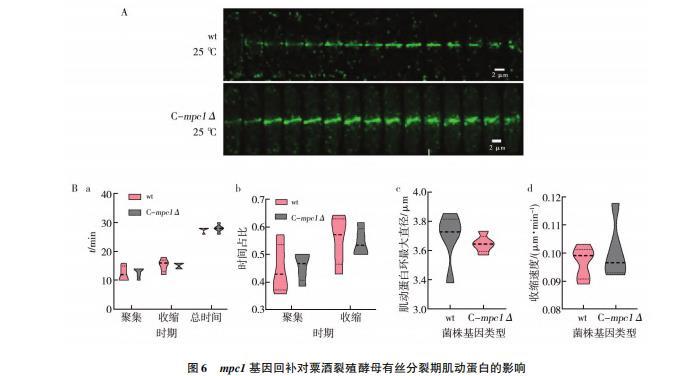
图 6 mpc1 基因回补对粟酒裂殖酵母有丝分裂期肌动蛋白的影响
A:25 ℃下,wt 和 C-mpc1Δ 菌株有丝分裂期肌动蛋白延时成像,横向代表每隔 2 min 拍摄一次;B:25 ℃下,wt 和 C-mpc1Δ 菌株肌动蛋白环形成和收缩时间(a)、肌动蛋白环形成和收缩时间占比(b)、肌动蛋白最大直径(c)、肌动蛋白环收缩速度(d),(n = 5)