mpc1 基因缺失对粟酒裂殖酵母有丝分裂期细胞骨架动力学的多维度影响
摘 要 细胞骨架调控线粒体的融合和分裂,同时线粒体也调控细胞骨架的正常动力学。mpc1 基因编码线粒体丙酮酸载体 1(mitochondrial pyruvate carrier 1),该蛋白位于线粒体内膜中,是线粒体丙酮酸载体复合物的重要成分。目前,尚未见相关文献报道 mpc1 基因缺失对酵母肌动蛋白等动力学的影响。本研究对粟酒裂殖酵母(Schizosaccharomyces pombe)的微管、组蛋白、肌动蛋白构建荧光标记,利用活细胞成像技术探究 mpc1 基因缺失对肌动蛋白等动力学的影响。结果表明,常温下 mpc1Δ 菌株与野生型菌株相比,纺锤体伸长时间缩短 6.70 min(P < 0.01)、伸长速率加快 0.17 μm/min(P < 0.01);染色体分离时间缩短 3.40 min(P < 0.01);肌动蛋白环聚集和收缩总时间延长 3.80 min(P < 0.01)。mpc1 基因缺失虽然促进了纺锤体伸长和染色体分离,但减缓了肌动蛋白环形成和收缩,最终导致细胞生长缓慢。本研究为进一步探究 mpc1 功能提供参考。
线粒体是真核细胞的能量工厂,是细胞通过氧化磷酸化和三羧酸循环途径合成 ATP 的场所。线粒体为保持其功能状态,通过不断地分裂和融合产生新的线粒体,消除旧的和受损的线粒体。
一方面,细胞骨架蛋白调控着线粒体形态和功能。Mmb1 蛋白(mitochondrial microtubule binder,线粒体微管结合蛋白 Mmb1)将线粒体和微管结合在一起,防止线粒体聚集和回缩,Mmb1 蛋白异常导致线粒体聚集且数量增加;βIII-微管蛋白及其 C 端尾部参与调节线粒体动力学和动态网状线粒体结构;Tea2 蛋白(kinesin family plus-end directed microtubule motor,驱动蛋白家族正端定向微管电机 Tea2)异常会导致线粒体碎片化且数量增加。
另一方面,线粒体蛋白也调控着细胞骨架的正常动力学。fzo1 基因(编码 Fuzzy onions protein 1,线粒体融合蛋白 Fzo1)缺失后,维管束数量增加,有丝分裂纺锤体组装异常;dnm1 基因(编码 dynamain-related protein1,线粒体分裂蛋白 Dnm1)缺失后,微管束长度增加,纺锤体伸长时间延长,染色体分离滞后;tom70 基因(编码 mitochondrial TOM complex TPR repeat subunit Tom70,线粒体 TOM 复合物 TPR 重复亚基 Tom70)缺失后,纺锤体断裂缺陷;afg1 基因(编码 AFG1 family mitochondrial ATPase,线粒体 AFG1 家族 ATP 酶)缺失后,营养生长期端粒更细长。mpc1 基因编码线粒体丙酮酸载体 1(mitochondrial pyruvate carrier 1,MPC1),该基因位于粟酒裂殖酵母(Schizosaccharomyces pombe)的第 3 条染色体上,其前后基因分别为 sec6、mug146。MPC1 蛋白由 141 个氨基酸组成,分子量为 16.06 kDa(图 1)。
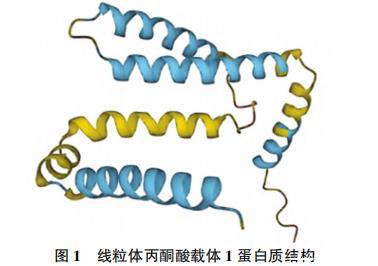
图 1 线粒体丙酮酸载体 1 蛋白质结构
MPC1 和 MPC2(mitochondrial pyruvate carrier 2,线粒体丙酮酸载体 2)组成线粒体内膜丙酮酸载体复合物 MPC,其具有跨膜转运蛋白活性,可以将丙酮酸从细胞质中转运到线粒体内,丙酮酸是糖类、脂质以及氨基酸的代谢中间产物。mpc1 缺失会诱导 MPC2 降解,导致 MPC 蛋白整体失活。mpc1 表达水平影响癌细胞的生存率,mpc1 表达降低促进 β-连环蛋白的核易位,从而激活 Wnt / β-连环蛋白途径,促进癌细胞的转移,而 MPC 过表达在体外抑制了癌细胞的运动。例如 mpc1 缺陷会加速肺腺癌进展,MPC1 过表达能抑制胃癌细胞。Liu 等研究发现,mpc1 基因缺失会导致细胞端粒变长。在裂殖酵母中,mpc1 缺失会导致细胞生长速度变慢,还会增加细胞对布雷菲尔丁 A、咖啡因、雷帕霉素的抗性以及对硼替佐米的敏感性。
人类 mpc1 失活会引发多种疾病,如迟发性运动障碍、乳酸性酸中毒、高丙酮酸血症、线粒体丙酮酸载体缺乏症等。酵母细胞是一种杆状单细胞真核模式生物,包括粟酒裂殖酵母、出芽酵母(Saccharomyces cerevisiae)等,其基因组结构简单并与人类相似。其中粟酒裂殖酵母的染色体结构保守,细胞形状规则,分裂时子细胞大小和长度均匀,常用于有丝分裂及细胞周期等的研究。在裂殖酵母中,mpc1 基因缺失会导致细胞生长速度变慢,但相关分子机制尚未揭示。本研究以粟酒裂殖酵母为研究对象,在 mpc1Δ 菌株中构建荧光蛋白标记,检测 mpc1 基因缺失对纺锤体、组蛋白、肌动蛋白等动力学的影响,同时构建 mpc1 基因回补菌株进行验证,为进一步探究 MPC1 蛋白功能提供参考。
1 材料与方法
1.1 材料
1.1.1 菌种来源
粟酒裂殖酵母(Schizosaccharomyces pombe)菌株(表 1),-80 ℃冻存在西南野生动植物资源保护教育部重点实验室(本实验室)。
表 1 粟酒裂殖酵母菌株编号、基因型及来源
注:h⁻、h⁺、h 均表示菌株性别,其中 h⁻ 表示该菌株为负菌,h⁺ 表示该菌株的正菌,h? 表示该菌株性别未知;wt 表示野生型菌株;mpc1Δ 表示 mpc1 基因缺失型菌株;GFP 为绿色荧光蛋白标记;Atb2 表示微管;Pact1-LifeAct 表示肌动蛋白;Hht2 表示组蛋白;Hygᴿ 表示潮霉素抗性;kanᴿ 表示卡那霉素抗性;URA4 表示尿嘧啶缺陷版;LEU1 表示亮氨酸缺陷版
1.1.2 培养基
YE5S 液体培养基:组氨酸、亮氨酸、尿嘧啶、腺嘌呤、赖氨酸各 0.11 g,葡萄糖 15.00 g,酵母提取物 2.50 g,超纯水 0.50 L;YE5S 固体培养基:在液体培养基的基础上加琼脂 8.50 g;EMM-N 产孢培养基:组氨酸、亮氨酸、尿嘧啶、腺嘌呤、赖氨酸各 0.11 g,葡萄糖 10.00 g,EMM-N 3.66 g,超纯水 0.50 L;YE5S + G418 (Hygᴿ) 固体筛选培养基:按照 YE5S 固体培养基配方配制并灭菌,待冷却凝固前加入 G418 (Hygᴿ),使其浓度为 0.30 g/L;LEU1 固体筛选培养基:组氨酸、尿嘧啶、腺嘌呤、赖氨酸各 0.11 g,EMM-2 16.17 g,琼脂 8.50 g,超纯水 0.50 L;URA4 固体筛选培养基:组氨酸、亮氨酸、腺嘌呤、赖氨酸各 0.11 g,EMM-2 16.17 g,琼脂 8.50 g,超纯水 0.50 L。
1.1.3 主要试剂与仪器设备
葡萄糖、酵母提取物、琼脂(Thermo Fisher Scientific 公司);巯基乙醇、腺嘌呤、赖氨酸、亮氨酸、尿嘧啶、组氨酸(Sigma-Aldrich 公司);山梨醇、乙二胺四乙酸、潮霉素(Hygᴿ)(上海麦克林生化科技有限公司);EMM-N(生物风资源技术服务公司);G418、甘油(广州赛国生物科技有限公司);蜗牛酶(上海源叶生物科技有限公司);Q5 High-Fidelity 2X MasterMix 酶(New England Biolabs 公司);限制性核酸内切酶(BamHI)(Takara 公司);Seamless cloning kit(北京擎科生物科技股份有限公司)。-80 ℃超低温冰箱(994,Thermo Fisher Scientific 公司);Ⅱ级生物安全柜(MSC-Advantage,Thermo Fisher Scientific 公司);恒温培养箱(DPX-9272B-1,Thermo Fisher Scientific 公司);冷冻离心机(5418R,Eppendorf AG 公司);恒温震荡器(THZ-Q,上海百典仪器设备有限公司);微生物生长动态监测系统 oCelloScope(Biosense Solutions ApS,丹麦);激光共聚焦倒置显微镜(TCS-SP8,Leica 公司);正置荧光显微镜(DMI3000B,Leica 公司);蒸汽灭菌锅(LDZX-30FA,上海申安医疗器械厂);PCR 仪(T100,Bio-Rad Laboratories 生命科学公司)。
1.2 方法
1.2.1 mpcΔ 菌株的构建及验证
选取质粒 pFA6a-KanMX6,设计前后引物:F1 (5'-TTTTTCTGCTCCACTAATAGGATAAGCTAGTAATTTGAAGCCTTTGGCAAGCCAACCACACCTATATTATTTTTTTAAAAACGGATCCCCCGGGTTAATTAA-3')、R1 (5'-CCCTTCCTTCGAATCAATTTTGTTAGAGCAAGTGACTTATCTGTTCACTCGTATTTTAAAGAATAAATACTTGACCCTTTGAATTCGAGCTCGTTTAAAC-3')。PCR 扩增得到 Kanᴿ 基因片段,PCR 条件为 98 ℃预变性 30 s、34 个循环(98 ℃变性 10 s、63 ℃退火 30 s、72 ℃延伸 2 min),72 ℃延伸 5 min,10 ℃保存。将扩增产物电泳并回收,采用醋酸锂转化法同源替换获得 mpc1Δ 菌株。
1.2.2 细胞形态的观察及生长监测
取出用甘油法保存在 -80 ℃冰箱中的野生型和 mpc1Δ 菌株,分别接种至 YE5S 固体培养基,25 ℃复苏 48 h 后,再接适量菌株至 YE5S 液体培养基,25 ℃、200 r/min 振荡培养活化 12 h(观察 37 ℃下细胞形态时,还需稀释后于 37 ℃下再活化 12 h)至菌液 OD595 在 0.5 ~ 0.8 之间时活化完成。使用正置荧光显微镜 100 倍油镜观察已活化完成的上述菌株细胞形态,截取 mpc1Δ 菌株及野生型菌株的细胞图像,测量细胞长度、纵横比、细胞面积等数据并作图分析。同时,采用丹麦 Biosense 微生物生长动态监测系统 oCelloScope 对野生型和 mpc1Δ 菌株的生长进行实时监测。将活化后的菌液按适当比例稀释后接种至 96 孔板中,每孔 200 μL,置于 oCelloScope 系统中,分别在 25 ℃和 37 ℃条件下连续监测 48 h,每 15 min 采集一次图像。通过系统内置的 BCA(Background Corrected Absorbance)算法自动获取生长曲线,并利用 SESA(Single Edge Segmentation Algorithm)算法提取单细胞形态学参数,包括细胞长度、面积和纵横比等。每个菌株设置 3 个生物学重复,每个重复 6 个技术复孔。
相关新闻推荐
1、Zn2+、Cd2+、Cry1Ac蛋白单独及联合暴露对大肠杆菌和枯草芽孢杆菌的毒性作用(三)