mpc1 基因缺失对粟酒裂殖酵母细胞形态、纺锤体动力学的影响
1.2.3 mpc1Δ 负菌的构建
复苏 mpc1Δ 正菌与野生型负菌后,将二者混匀涂布至 EMM-N 产孢培养基上,25 ℃培养 2 d 后产孢。用蜗牛酶溶液酶解子囊壁释放孢子,用无菌 ddH₂O 清洗孢子 3 次,经相应抗性筛选培养基筛选后,挑出多个单克隆菌落于 25 ℃扩大培养 2 d 后,将单菌落分别与已复苏的野生型正负菌株混匀后涂布至 EMM-N 产孢培养基上,25 ℃培养 2 d 后镜检是否产孢,与野生型正菌产孢且不与野生型负菌产孢的单菌落即为负菌,扩大培养后保存 mpc1Δ 负菌(表 1)。
| 菌株编号 | 基因型 | 菌种来源 |
|---|---|---|
| PT286 | h⁻ wt | Phong Tran |
| PT287 | h⁺ wt | |
| CF2046 | h⁻ wt: GFP-Atb2:Hygᴿ | |
| PT3850 | h⁺ wt: Pact1-LifeAct-mGFP:LEU1 | |
| PT4280 | h⁻ wt: Hht2-GFP:URA4 | |
| 997-1 | h⁺ mpc1Δ: kanᴿ | |
| 997-2 | h⁻ mpc1Δ: kanᴿ | |
| 997a | h? mpc1Δ: GFP-Atb2:Hygᴿ | 本研究 |
| 997b | h? mpc1Δ: Pact1-LifeAct-mGFP:LEU1 | |
| 997c | h? mpc1Δ: Hht2-GFP:URA4 |
1.2.4 荧光蛋白构建
荧光蛋白标记的构建是通过将带有不同目的荧光蛋白标记的野生型菌株分别与对应的异性 mpc1Δ 菌株杂交来实现,产孢后用蜗牛酶溶液酶解子囊壁释放孢子,用无菌 ddH₂O 清洗孢子 3 次,经抗性筛选培养基或氨基酸缺陷培养基筛选后,挑出单克隆菌落,利用正置荧光显微镜观察标记,选择带有荧光标记的菌株纯化并扩大培养保存(表 1)。
1.2.5 回补菌株的构建
选取质粒 pFA6a-5FLAG-hphMx6,设计前后引物:F1 (5'-TTCGTACGCTGCAGGTCGACTTCATCAACTGATTGAGGT-3')、R1 (5'-CATATGATTAATTAACCCGGGGATCCGCTAGATTGTGTAACTGAAC-3'),从粟酒裂殖酵母野生型菌株中扩增 mpc1 基因片段,电泳并回收扩增产物。用 BamHI 酶切质粒,采用同源重组法将 mpc1 基因酶连到质粒上。采用醋酸锂转化法将质粒转化到 997b 酵母细胞中,经抗性筛选验证后获得回补菌株 C-mpc1Δ。
1.2.6 活细胞成像
将保存于 -80 ℃冰箱的菌株接种至 YE5S 固体培养基,25 ℃复苏 72 h 后,接种适量菌株到 YE5S 液体培养基中,于 25 ℃下活化 12 h(进行 37 ℃下活细胞成像时还需稀释后于 37 ℃下再活化 12 h)。用活化后的菌株制片,使用激光共聚焦倒置显微镜对菌株进行活细胞成像观察。成像参数为每帧间隔 2 min,像素 512 μm × 512 μm,曝光时间 400 ms,从上至下共 7 层,每层间隔 1 μm,拍摄温度 25 ℃或 37 ℃。
1.2.7 统计学分析
使用 Image J 进行图像处理、数据测定,所有数据均表示为平均值 ± SD,使用 GraphPad prism 8 做图,使用 IBM SPSS statistics 23.0 进行统计学分析。统计学差异:和*分别表示野生型与 mpc1Δ 菌株差异显著(P < 0.05)和极显著(P < 0.01)。
2 结果与分析
2.1 mpc1 基因缺失对细胞形态的影响
对比野生型菌株(wt)和 mpc1Δ 菌株细胞形态结果显示,有丝分裂间期 mpc1Δ 菌株细胞形态良好,呈长杆状,未出现空泡等异常表型(图 2A)。利用 oCelloScope 系统的高通量成像及自动分析功能,在 25 ℃下对大量细胞进行形态学统计分析。结果显示,wt 和 mpc1Δ 菌株的细胞长度(图 2B)、纵横比(图 2C)、细胞面积(图 2D)分别为(13.19 ± 1.45)μm、(3.84 ± 0.62)、(40.22 ± 5.79)μm² 和(12.46 ± 1.27)μm、(3.37 ± 0.51)、(39.84 ± 4.78)μm²。mpc1Δ 菌株与 wt 相比,细胞面积无显著差异,但细胞长度、细胞纵横比分别增加 0.73 μm(P < 0.01)、0.47(P < 0.01)。以上结果提示,mpc1 基因缺失会导致细胞 25 ℃下变得更细长。37 ℃下细胞形态统计分析结果显示,wt 和 mpc1Δ 菌株的细胞长度(图 2E)、纵横比(图 2F)、细胞面积(图 2G)分别为(12.13 ± 1.39)μm、(2.27 ± 0.37)、(56.44 ± 9.55)μm² 和(11.83 ± 1.31)μm、(2.16 ± 0.37)、(53.52 ± 7.52)μm²。mpc1Δ 菌株与 wt 的细胞长度、纵横比、细胞面积无显著差异。与 25 ℃相比,37 ℃下 mpc1Δ 菌株细胞形态恢复正常。此外,oCelloScope 系统实时监测的生长曲线表明,在 25 ℃条件下,mpc1Δ 菌株的对数生长期斜率低于野生型,达到稳定期的时间更长,与细胞形态变化的趋势一致。
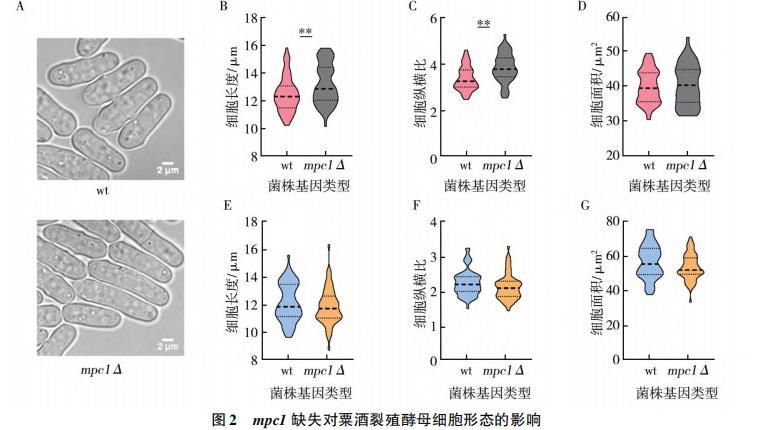
图 2 mpc1 缺失对粟酒裂殖酵母细胞形态的影响
A:野生型菌株(wt)和 mpc1Δ 菌株有丝分裂间期细胞形态;B ~ D:25 ℃下,野生型细胞和 mpc1Δ 细胞的长度、纵横比、面积(n = 60);E ~ G:37 ℃下,野生型细胞和 mpc1Δ 细胞的长度、纵横比、面积(n = 60); P < 0.05 表示 wt 与 mpc1Δ 菌株差异显著,*P < 0.01 表示 wt 与 mpc1Δ 菌株差异极显著,下图同
2.2 mpc1 基因缺失对纺锤体动力学的影响
在细胞分裂期,微管组装形成纺锤体,随着分裂的进行,纺锤体逐渐伸长至断裂,纺锤体的伸长帮助染色体移动到细胞两极,使子细胞都能够获得完整的遗传物质,保证生命体遗传物质的完整性。利用绿色荧光蛋白标记 mpc1Δ 菌株的微管(图 3),探究 mpc1 基因缺失对粟酒裂殖酵母纺锤体动力学的影响。每隔 2 min 拍摄一次的纺锤体形态结果显示(图 3A 从左至右),25 ℃下 mpc1Δ 菌株的纺锤体伸长总时间少于 wt,37 ℃下 mpc1Δ 菌株纺锤体伸长总时间与 wt 相近。统计 25 ℃下纺锤体动力学发现(图 3Ba、3C),wt 和 mpc1Δ 菌株纺锤体伸长总时间、总长度、总速率分别为(23.70 ± 2.18)min、(10.44 ± 0.71)μm、(0.44 ± 0.05)μm/min 和(17.00 ± 1.89)min、(10.37 ± 0.54)μm、(0.62 ± 0.09)μm/min。与 wt 相比,mpc1Δ 菌株有丝分裂纺锤体伸长长度无显著性差异,但伸长时间极显著缩短 6.70 min(P < 0.01),伸长速率极显著增加 0.17 μm/min(P < 0.01)。
以上结果提示,mpc1 基因缺失会缩短纺锤体伸长时间,加快纺锤体伸长速率,但不影响纺锤体伸长长度。进一步分析 25 ℃下各时期纺锤体伸长时间和速率结果显示(图 3Ba、3C),wt 和 mpc1Δ 菌株纺锤体在前、中、后期伸长时间分别为(5.40 ± 1.85)、(6.30 ± 1.63)、(12.00 ± 1.30)min 和(4.10 ± 0.79)、(3.90 ± 1.37)、(9.00 ± 1.38)min。与 wt 相比,mpc1Δ 菌株纺锤体在前、中、后期伸长时间分别极显著缩短 1.30(P < 0.01)、2.40(P < 0.01)、3.00 min(P < 0.01)。wt 和 mpc1Δ 菌株在前、中、后期纺锤体伸长速率分别为(0.27 ± 0.08)、(0.12 ± 0.06)、(0.70 ± 0.10)μm/min 和(0.32 ± 0.08)、(0.19 ± 0.08)、(0.95 ± 0.15)μm/min。与 wt 相比,mpc1Δ 菌株有丝分裂前期纺锤体伸长速率无显著差异,但中、后期纺锤体伸长速率分别极显著增加 0.07(P < 0.01)、0.24 μm/min(P < 0.01)。结果提示,mpc1 基因缺失导致纺锤体中期和后期伸长时间缩短、伸长速率加快。统计 37 ℃下纺锤体动力学发现(图 3Bb、3D),wt 和 mpc1Δ 菌株纺锤体伸长总时间、总长度、总速率分别为(19.80 ± 2.14)min、(12.23 ± 1.42)μm、(0.66 ± 0.09)μm/min 和(19.20 ± 2.19)min、(12.17 ± 1.77)μm、(0.68 ± 0.10)μm/min。与 wt 相比,mpc1Δ 菌株有丝分裂纺锤体伸长时间、长度、速率无显著性差异。与 25 ℃相比,高温胁迫下 mpc1Δ 菌株纺锤体伸长时间、伸长速率恢复正常。
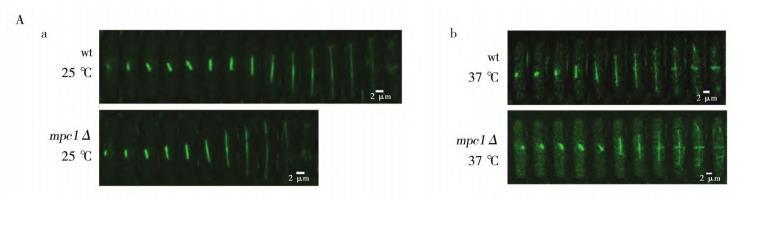
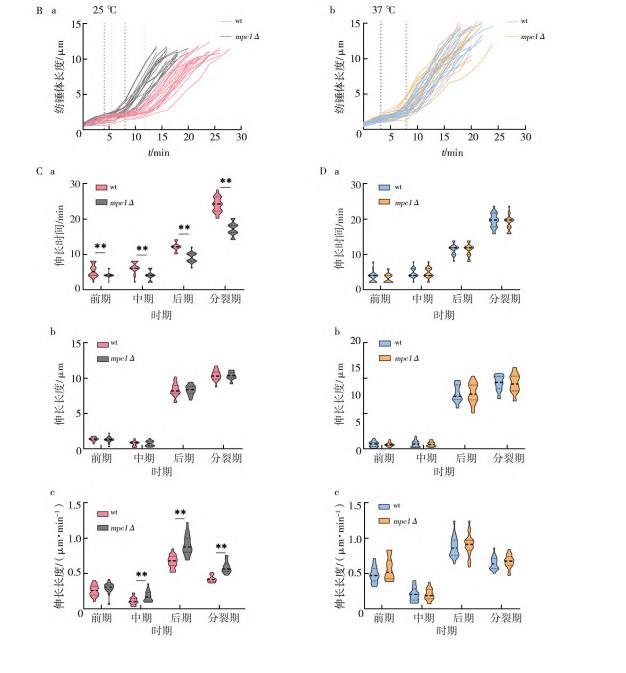
图 3 mpc1 缺失对粟酒裂殖酵母纺锤体的影响
A:25 ℃(a)、37 ℃(b)下,wt 和 mpc1Δ 菌株在有丝分裂期纺锤体延时成像,横向代表每隔 2 min 拍摄一次;B:25 ℃(a)、37 ℃(b)下,wt 和 mpc1Δ 菌株纺锤体伸长曲线(n = 20),虚线表示从前期到中期的过渡、从中期到后期的过渡;C ~ D:25、37 ℃下,wt 和 mpc1Δ 菌株有丝分裂不同时期纺锤体伸长时间(a)、纺锤体伸长长度(b)、纺锤体伸长速度(c),(n = 20)
相关新闻推荐
1、生长曲线测定法和菌落计数法确定YchJ对鼠伤寒沙门菌抗逆能力的影响——摘要